

购物车
 您的购物车当前为空
Syrosingopine (TN2252),CAS: 84-36-6 是一种可口服的小分子,能够双重抑制质子偶联的单羧酸转运体 MCT1(SLC16A1)与 MCT4(SLC16A3),且对 MCT4 的抑制效力约高出 60 倍。MCT1/MCT4 负责乳酸与 H+ 的同步跨膜转运,这一过程维系糖酵解通量、乳酸脱氢酶驱动的 NAD+/NADH 循环以及胞内外 pH 稳态。在缺氧或高度糖酵解表型中,MCT4 主导乳酸/H+ 外排以避免胞内酸化;MCT1 则依赖浓度梯度承担摄取或外排。通过优先抑制 MCT4 并同时抑制 MCT1,Syrosingopine 阻断乳酸与质子的外排,引发胞内乳酸累积与质子负荷、酸化,进而反馈抑制糖酵解和能量代谢,尤其对依赖“Warburg”代谢的细胞产生显著代谢压力[1]。 该机制与代谢可塑性的上游调节密切相关。HIF‑1α 在缺氧条件下提升 MCT4 表达;而依赖 MCT1/MCT4 的“乳酸穿梭”使氧化型细胞可利用邻近糖酵解细胞释放的乳酸。Syrosingopine 通过切断此通量扰动 NADH/NAD+ 平衡、破坏质子耦联的 pH 控制并重塑微环境中的乳酸梯度。其与线粒体复合体 I 抑制剂(如二甲双胍)的协同可从原理上解释:抑制氧化磷酸化迫使细胞更依赖糖酵解,而同步阻断乳酸/H+ 外排使红氧与 pH 缓冲失灵,从而叠加能量应激,揭示高糖酵解、MCT4 高表达状态的合成脆弱性[1]。 此外,Syrosingopine 与多巴胺能生物学有关。多巴胺受体为 G 蛋白偶联受体,D1 样亚型提高 cAMP/PKA 信号,D2 样亚型则抑制之,并通过离子通道、MAPK 级联与转录(如 CREB)调控影响代谢与转运体表达[2]。据此,可将 Syrosingopine 与受体配体或遗传干预联用,用于解析多巴胺受体信号与单羧酸转运之间的串扰,包括对乳酸处理、糖酵解设定点及应激通路的影响。 作为既往抗高血压药物,Syrosingopine 的口服可用性为需全身暴露与重复给药的体内研究提供便利。其对 MCT1/MCT4 的双重抑制(显著偏向 MCT4)使之成为研究工具,用于:(i)界定转运体在糖酵解、红氧与 pH 稳态中的作用;(ii)描绘组织内依赖乳酸穿梭的代谢协作;(iii)与线粒体抑制剂或多巴胺能调节手段联用,以发现多种细胞情境下的代谢弱点[1,2]。
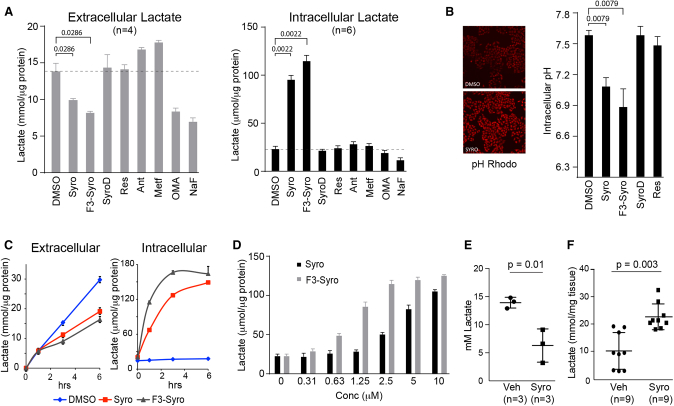
▲ Syrosingopine 导致细胞内乳酸升高。 (A) HeLa 细胞经指定药物处理 3 小时后,检测细胞外和细胞内乳酸水平(Syrosingopine、F3-syro、SyroD、利血平均为 10 μM;抗霉素 A [Ant] 0.5 μM;二甲双胍 5 mM;草氨酸 [OMA] 20 mM;NaF 5 mM);(B) 药物处理(10 μM,3 小时)后 HeLa 细胞内 pH 检测(pHrodo 染色,n=5);(C) 指定药物(10 μM)处理后 HeLa 细胞细胞外和细胞内乳酸积累速率;(D) Syrosingopine 和 F3-syro 引起的细胞内乳酸水平剂量依赖性增加(HeLa 细胞处理 3 小时);(E) Syrosingopine 处理小鼠的血清乳酸水平;(F) 从载体和 Syrosingopine 处理的小鼠中切除的肝肿瘤结节内的乳酸水平。每个实验在 (A)–(D) 中进行两次。数据以均值 ± SEM 表示。
Syrosingopine (TN2252) 被明确描述为同时抑制乳酸转运蛋白MCT1与MCT4,并显示与二者存在直接相互作用。实验中,Syrosingopine 降低了细胞外乳酸水平,同时以剂量依赖方式升高细胞内乳酸。放射性示踪实验显示其处理后乳酸摄取量高于DMSO对照;在K562细胞中,Syrosingopine 增加了净乳酸摄取,提示其对MCT1介导的乳酸外排抑制强于对内流的影响。研究同时指出伴随出现细胞内乳酸累积与酸化。有限蛋白水解结合实验进一步显示,Syrosingopine 使MCT1产生受保护片段并减少MCT4特定片段的水解,支持其与两种转运体结合。功能层面,二甲双胍与 Syrosingopine 呈合成致死关系,包括在HAP1 MCT4-KO细胞中;且Syrosingopine 与MCT1抑制剂ARC155858联用可将二甲双胍的IC50降至约0.9 mM。机制上,Syrosingopine 与二甲双胍联用显著降低总NAD,伴随NAD+/NADH比值下降与ATP减少;外源NMN或NAD+可在该联用条件下恢复ATP水平。在HL60细胞中,Syrosingopine 联合二甲双胍8小时后ATP轻度下降,而外源维生素K2可剂量依赖性部分恢复ATP,支持通过提升NAD+来改善能量状态。[3]
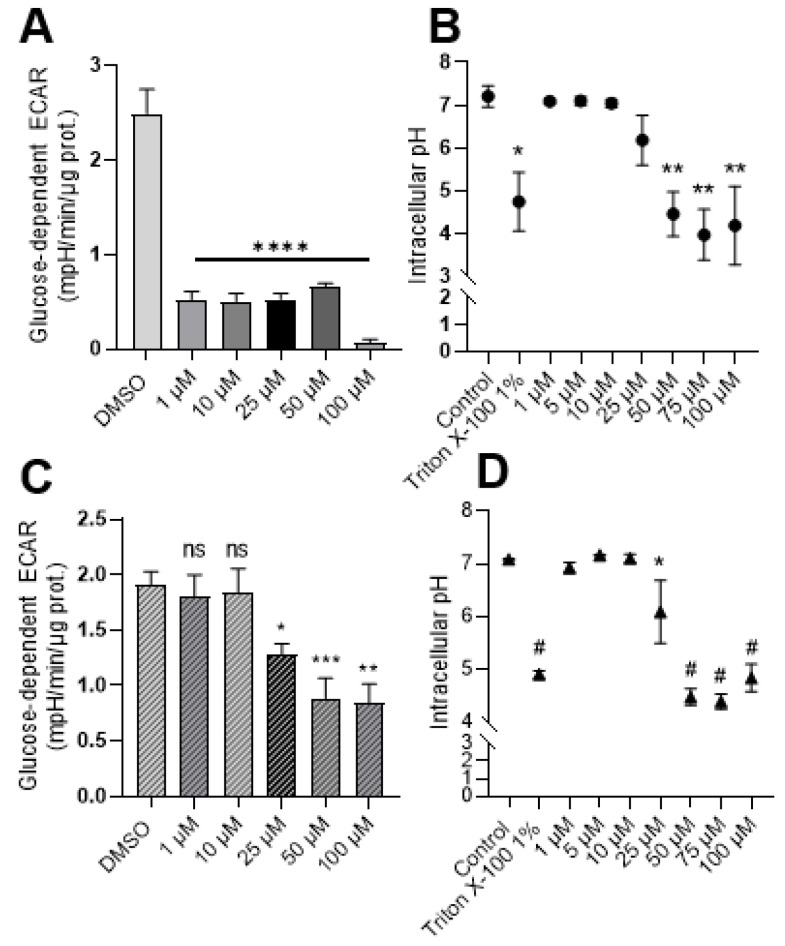
▲ Syrosingopine 降低癌细胞的胞外酸化率(ECAR)并降低胞内 pH。 (A) 在 MDA-MB-231 细胞中,使用 Seahorse XF96 生物能量分析仪测定经不同浓度 Syrosingopine 处理 24 小时后的葡萄糖依赖性 ECAR;(B) 在 MDA-MB-231 细胞中,测定经不同浓度 Syrosingopine 处理 72 小时后的胞内 pH 值;(C) 在 FaDu 细胞中,测定经不同浓度 Syrosingopine 处理 24 小时后的葡萄糖依赖性 ECAR;(D) 在 FaDu 细胞中,测定经不同浓度 Syrosingopine 处理 72 小时后的胞内 pH 值。结果表明,Syrosingopine 呈浓度依赖性地抑制癌细胞的糖酵解代谢(降低 ECAR),并显著降低胞内 pH。数据为至少三次独立实验的均值 ± SEM;单因素或双因素 ANOVA 检验:p < 0.05;p < 0.01;p < 0.001;# = ****p < 0.0001;ns = 无显著差异。
Syrosingopine (TN2252) 已知可同时抑制MCT1与MCT4,并在高浓度条件下对MCT4表现出约60倍于MCT1的更高效力。作为单羧酸转运体抑制的结果,随Syrosingopine浓度升高,MDA-MB-231细胞的胞外酸化速率显著下降。在更偏氧化代谢的FaDu模型中,25 µM的Syrosingopine同样引起胞外酸化速率的显著降低。与上述变化一致,Syrosingopine可降低癌细胞的胞外酸化速率,并使细胞内pH下降。除酸碱相关指标外,Syrosingopine还影响葡萄糖代谢以及细胞活力、细胞增殖与凋亡等生物学过程。总体而言,这些结果显示Syrosingopine能够功能性抑制单羧酸转运,进而在特定体外条件下引发肿瘤细胞酸碱平衡的可测改变,包括胞外酸化速率的降低与细胞内pH的下降,并伴随对代谢与细胞活力相关终点的影响。[4]
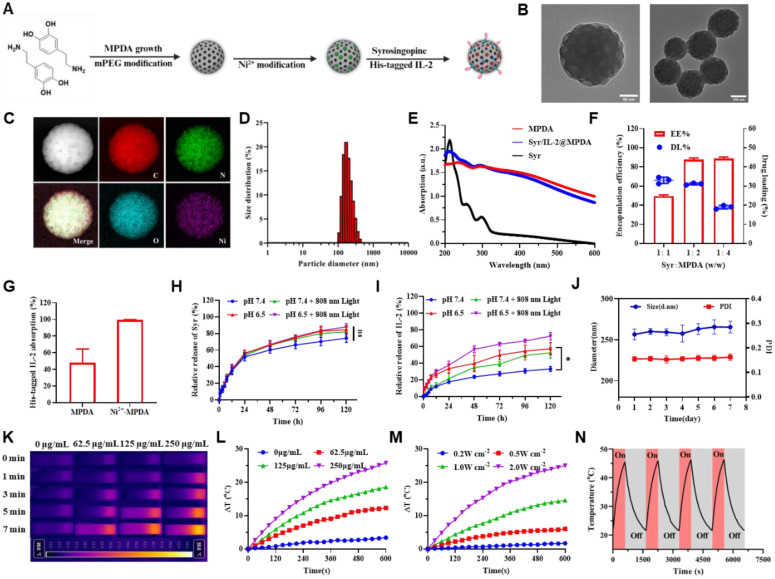
▲ (A) Syr/IL-2@MPDA 的合成路线示意图;(B) Syr/IL-2@MPDA 的 TEM 图像;(C) Syr/IL-2@MPDA 的 EDS-HAADF 元素分析;(D) Syr/IL-2@MPDA 的数量加权粒径分布;(E) Ni-MPDA、Syr/IL-2@MPDA 及游离 Syrosingopine (Syr) 的紫外-可见吸收光谱;(F) 不同 Syr 投入量下 MPDA (1 mg) 对 Syrosingopine 的包封效率 (EE) 和载药量 (DL);(G) His 标记的 IL-2 (1 µg) 与 MPDA 或 Ni-MPDA (1 mg) 在 4 °C 共孵育 1 小时后的吸附百分比;(H, I) Syr/IL-2@MPDA 中 Syrosingopine (H) 和 IL-2 (I) 在 PBS 中的相对释放曲线;(J) Syr/IL-2@MPDA 在含 10% FBS 的 PBS 中 7 天内的强度加权流体力学尺寸和 PDI;(K) 不同浓度 Syr/IL-2@MPDA 溶液在激光照射 (2.0 W/cm²) 下的红外热成像;(L) 不同浓度 Syr/IL-2@MPDA 溶液在激光照射 (2.0 W/cm²) 下的光热升温曲线;(M) Syr/IL-2@MPDA 溶液 (250 µg/ml) 在激光照射下的光热升温曲线;(N) 四次激光照射-自然冷却循环下的光热稳定性。误差棒表示均值 ± SD (n = 3)。
Syrosingopine (TN2252) 被负载于Ni2+-介孔多巴胺并协同IL-2构建纳米体系,表现出对Syrosingopine的快速释放特征:24小时释放约50%,120小时超过70%,且在轻度酸性条件下Syrosingopine的释放仅受到中度影响;该载体对Syrosingopine具有高效负载能力。体外实验中,含有Syrosingopine的配方使肿瘤细胞活性降至约85%,主要归因于Syrosingopine阻断肿瘤细胞乳酸转运。该纳米悬液在近红外照射下呈现浓度依赖的光热效应。双侧移植瘤小鼠模型显示,Syrosingopine/IL-2@MPDA联合光照可中度抑制原位与远处肿瘤生长,并与αPD-L1联用时达到最强的抗肿瘤效果;在此过程中,因轻度光热效应导致的PD-L1表达升高,与将“冷肿瘤”转化为免疫敏感的“热肿瘤”并放大免疫检查点阻断效应相一致。原位肝癌大鼠模型中,将Syrosingopine/IL-2@MPDA与光照加入经动脉栓塞后,可抑制肿瘤生长,并在与αPD-L1联用时效果更佳,同时观察到肿瘤组织中CD8+ T细胞浸润,其中三联组的募集最高。对接受Syrosingopine/IL-2@MPDA加光照与栓塞处理的肿瘤进行转录组分析,发现数百个差异基因,上调的抗肿瘤免疫调节因子与下调的免疫抑制因子并存,富集通路与生物过程指向免疫活化、T细胞介导细胞毒性正调控、活化T细胞增殖与分化以及CD8+ T细胞反应的增强。[5]
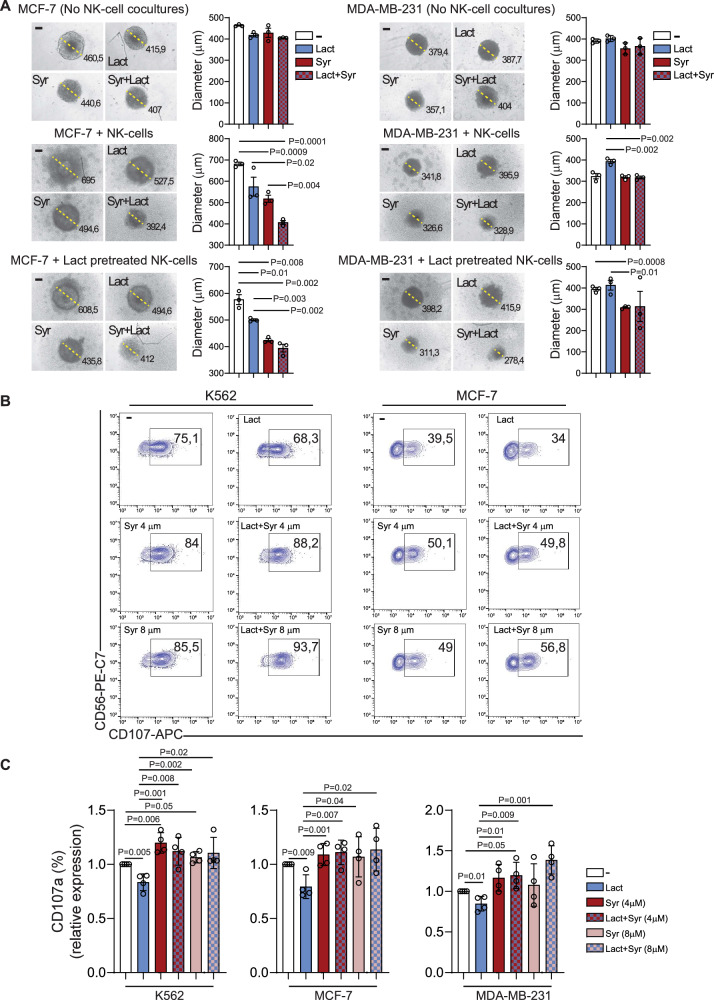
▲ Syrosingopine 逆转乳酸诱导的 NK 细胞细胞毒性抑制和肿瘤控制。 (A) MCF-7(左)和 MDA-MB-231(右)肿瘤球体在单独培养(上图)、与 NK 细胞共培养(中图)、或与乳酸暴露的 NK 细胞在仅培养基(−)、乳酸(Lact)、Syrosingopine(Syr)或乳酸与 Syrosingopine 联合(Syr+Lact)条件下培养 48 小时的代表性直径测量图像。右侧柱状图表示均值 ± SEM,来自三个独立生物学实验(不同健康供体的 NK 细胞,n=3),每个点代表一个供体。统计学分析采用单因素方差分析及 Dunn 多重比较检验。(B) 人 CD45⁺CD56⁺CD16⁺CD3⁻ NK 细胞脱颗粒的代表性实例,以与 K562 或 MCF-7 靶细胞刺激后 CD107a 表面表达进行测量,处理条件为仅培养基(−)、乳酸(Lact)、4 μM(Syr 4 μM)或 8 μM Syrosingopine(Syr 8 μM)、或乳酸与 Syrosingopine 的联合(Lact + Syr 4 μM 或 8 μM)。图中显示了 CD107a⁺ NK 细胞的百分比。(C) 使用来自四个健康供体的 NK 细胞(n=4)在相同条件下(B 中所述)刺激后,对 NK 细胞脱颗粒作用的汇总。每个点代表一个供体(n=4)。统计学分析采用单因素方差分析及 Dunn 多重比较检验。仅在具有统计学显著性时报告精确 P 值;未指出的比较未达到统计学显著性。
Syrosingopine (TN2252) 被描述为可同时抑制MCT1/MCT4并阻断乳酸与质子外排的化合物。在2D培养中,随剂量递增处理48小时得到的IC30分别为MCF-7细胞18 μM与MDA-MB-231细胞15 μM。在两种来源的3D肿瘤类器官模型中,Syrosingopine呈剂量依赖性抑制类器官生长,且随浓度升高其结构完整性与三维结构逐步恶化,尤以MCF-7更为明显。在分子与细胞学层面,MDA-MB-231细胞中MCT4蛋白表达出现显著下降;同时,免疫细胞化学显示两种细胞系在用药后MCT1与MCT4的染色强度均明显降低。功能读出方面,Syrosingopine在处理后最早30分钟即引发细胞内荧光显著升高,提示胞内pH下降,且该变化可持续至4小时;同时,来自两类类器官培养上清中的乳酸分泌显著降低。在与人源NK细胞的共培养体系中,Syrosingopine逆转了乳酸对NK细胞活性的抑制,恢复了对两种乳腺癌类器官的细胞毒作用,表现为24小时类器官内凋亡显著增加与48小时类器官直径缩小。即便NK细胞预先暴露于外源乳酸,Syrosingopine所带来的功能恢复仍得以维持,体现在持续升高的凋亡水平与进一步的类器官缩小。[6]
Syrosingopine 通过双重抑制质子偶联的单羧酸转运体 MCT1 和 MCT4(尤以 MCT4 抑制效力显著更高),阻断乳酸与质子外排,导致胞内乳酸累积和酸化,反馈抑制糖酵解及能量代谢,特别作用于依赖“Warburg”代谢的细胞。文献表明,Syrosingopine 可显著降低胞外酸化速率、降低胞内 pH,抑制肿瘤细胞增殖,并与线粒体抑制剂(如二甲双胍)协同,耗竭 NAD+ 和 ATP 加剧代谢压力。此外,Syrosingopine 能逆转乳酸介导的免疫抑制,恢复 NK 细胞活性,并在光热及免疫治疗联合方案中增强抗肿瘤免疫反应。未来研究可聚焦于 Syrosingopine 在代谢与免疫治疗联用中的潜力,探索其与多巴胺能信号的串扰作用,并作为化学探针解析肿瘤代谢合作与脆弱性。
Q1: Syrosingopine 的主要作用机制是什么?
A1: Syrosingopine 通过双重抑制 MCT1 和 MCT4(尤其是 MCT4),阻断乳酸和质子的外排,导致胞内乳酸累积和酸化,进而抑制糖酵解和能量代谢。
Q2: Syrosingopine 如何与二甲双胍协同作用?
A2: Syrosingopine 与二甲双胍联用显著降低总 NAD 和 NAD+/NADH 比值,减少 ATP,诱发代谢压力,产生合成致死效应。
Q3: Syrosingopine 在免疫调节方面有哪些表现?
A3: Syrosingopine 能逆转乳酸介导的 NK 细胞功能抑制,恢复 NK 细胞细胞毒性,并在与光热治疗及免疫检查点阻断联合时增强抗肿瘤免疫反应。
[1] Doherty JR, Cleveland JL, et al. Targeting lactate metabolism for cancer therapeutics. J Clin Invest. 2013;123(9):3685-3692.
[2] Beaulieu JM, Gainetdinov RR, et al. The physiology, signaling, and pharmacology of dopamine receptors. Pharmacol Rev. 2011;63(1):182-217.
[3] Benjamin D, Robay D, Hindupur S, Pohlmann J, Colombi M, El-Shemerly M, et al.. Dual Inhibition of the Lactate Transporters MCT1 and MCT4 Is Synthetic Lethal with Metformin due to NAD+ Depletion in Cancer Cells. Cell Reports. 2018;25(11):3047-3058.e4.
[4] Buyse C, Joudiou N, Warscotte A, Richiardone E, Mignion L, Corbet C, et al.. Evaluation of Syrosingopine, an MCT Inhibitor, as Potential Modulator of Tumor Metabolism and Extracellular Acidification. Metabolites. 2022;12(6):557.
[5] Qiu F, Chen X, He Q, Li K, Chai X, Fang S, et al.. Mesoporous polydopamine nanoplatform enhances IL-2 immunotherapy for hepatocellular carcinoma via mild photothermal therapy and lactate regulation.. Asian journal of pharmaceutical sciences. 2026;21(3):101165.
[6] Ielpo S, Barberini F, Gaiba A, Baronti C, Greppi M, Obino V, et al.. Lactate-mediated NK cell dysfunction as a prognostic marker and therapeutic target in breast cancer.. Cell death discovery. 2026;12(1):.
科学新闻、观点和分析的重要汇总,每个工作日都会发送到您的收件箱.
 嗨!有任何问题?点我咨询
版权所有©2015-2026 TargetMol Chemicals Inc.保留所有权利.
沪ICP备20019793号-4 | 沪公网安备 31010602006700号 | 沪(静)应急管危经许[2024]203441