

购物车
 您的购物车当前为空
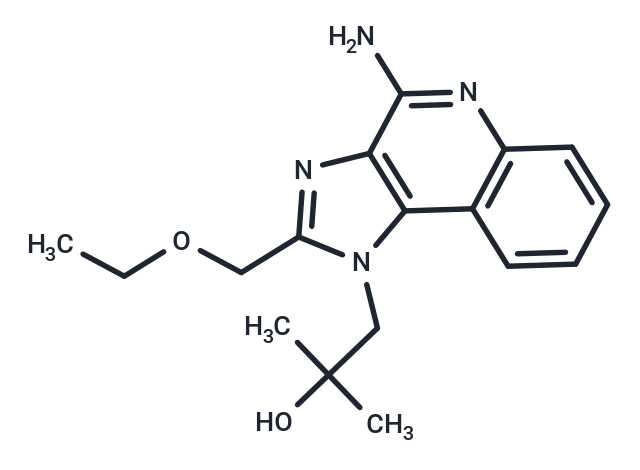
▲ Resiquimod (T6964),CAS: 144875-48-9
Resiquimod (T6964),CAS: 144875-48-9 是一种作用于内体定位的Toll样受体TLR7/TLR8的小分子激动剂,能够模拟单链RNA配体并启动依赖MyD88的先天免疫级联反应。Resiquimod 与TLR7/TLR8结合后促进受体二聚化并募集适配体MyD88,进而组装包含IRAK家族激酶与TRAF6的信号复合体;其下游通过TAK1与IKK复合体活化NF-κB,同时在浆细胞样树突细胞等细胞中激活IRF7,驱动I型干扰素基因转录。由此产生的功能结果是TNF-α与IL-6的显著上调以及IFN-α的诱导,体现其免疫调节特性[1,2]。 从生物学功能看,该通路把病原识别与广泛的转录重编程相衔接,诱导干扰素刺激基因并建立抗病毒状态。在实验研究中,Resiquimod 被广泛用于解析TLR7与TLR8的配体识别差异、物种特异性与细胞类型限制性响应,有助于剖析MyD88–IRAK–TRAF模块、NF-κB动力学以及IRF7介导的干扰素生物学[1,2]。通过增强启动抗原提呈细胞的先天信号,它可用于构建以Th1偏向细胞因子环境和共刺激网络为特征的免疫交互模型,覆盖树突细胞、单核/巨噬细胞、NK细胞以及T、B淋巴细胞间的串扰。 在TLR信号通路层面,Resiquimod 作为近端触发因子,通过NF-κB上调TNF-α和IL-6,并通过IRF7诱导IFN-α,将炎症轴与抗病毒轴紧密耦联。在病毒学研究中,这些输出有助于探索宿主对RNA病毒(包括丙型肝炎病毒,HCV)的限制机制。由于TLR7/TLR8感知汇聚至I型干扰素程序并拮抗与病毒蛋白酶相关的复制步骤,Resiquimod 可作为连接TLR信号与HCV蛋白酶相关表型的工具,用于描绘与肝嗜性RNA病毒相关的干扰素效应通路。 其强有力的先天免疫激活能力支撑了在肿瘤与抗病毒方向的前沿研究用途,包括增强抗原呈递、提升促炎性细胞因子背景以及评估与TLR下游通路的协同效应。另一方面,持续或过度的TLR7/TLR8激活可被用于构建疾病相关炎症模型:Resiquimod 常用于诱导心肌炎与系统性红斑狼疮(SLE)样表型,以解析细胞因子驱动的组织损伤、核酸感知检查点以及干扰素特征。这些模型有助于检验先天-适应性耦联、细胞因子网络扰动以及TLR级联反馈调控等关键假设[1,2]。
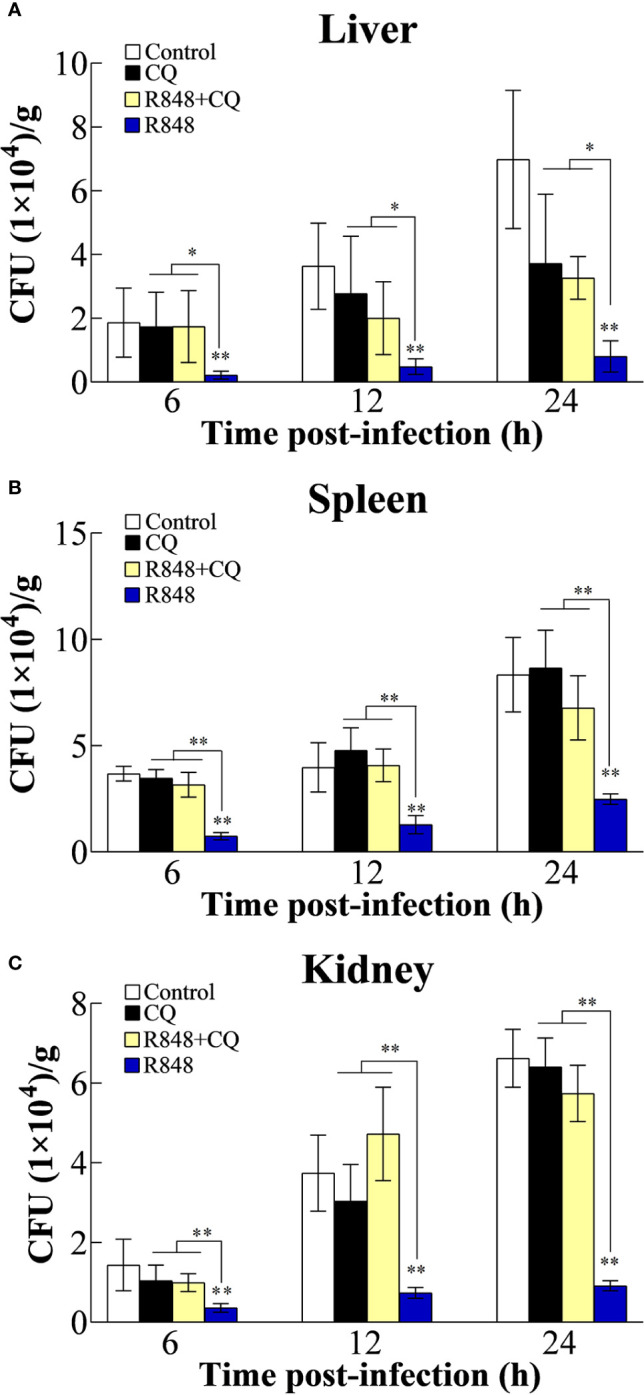
▲ Resiquimod (R848) 和氯喹 (CQ) 对细菌感染的影响。 卵形鲳鲹分别经 R848、CQ、R848+CQ 或 PBS(对照组)处理后,感染迟缓爱德华氏菌 (Edwardsiella tarda),并在不同时间点测定肝脏 (A)、脾脏 (B) 和肾脏 (C) 中的细菌载量 (CFU)。结果表明,与对照组相比,Resiquimod (R848) 处理组在 6、12 和 24 小时均显著降低了三个器官中的细菌载量,表现出强效的抗菌作用;而 CQ 单独处理对细菌清除无明显影响,且 CQ 的加入会部分削弱 R848 的抗菌效果。所有数据均以均值 ± SD (N=5) 表示,*P < 0.05,**P < 0.01。
Resiquimod (T6964) 被描述为TLR7/8的特异性激活剂,并通过TLR7/8–Myd88–NF‑kB通路在金鲳抗菌免疫中发挥关键作用。研究显示,Resiquimod以剂量依赖方式促进头肾淋巴细胞增殖,提升其存活,并在体内抑制细菌复制;在接受Resiquimod的鱼体内,肝、脾、肾的Edwardsiella tarda感染水平显著低于对照。机制上,阻断内体酸化的氯喹显著减弱Resiquimod诱导的效应,Myd88抑制剂Pepinh‑MYD也显著降低Resiquimod介导的淋巴细胞增殖与存活。Resiquimod增强NF‑kB活性,而氯喹或Pepinh‑MYD的存在可降低该活性;此外,NF‑kB抑制剂使Resiquimod的促增殖与促存活效应显著下降。遗传学干预进一步支持该通路依赖性:在注射Resiquimod后敲低TLR7、TLR8或Myd88,与仅用Resiquimod相比,鱼组织内细菌扩散与定植增加。转录水平上,Resiquimod显著上调所检测的免疫相关基因的表达,包括IFN‑g、IRF3、TNF‑a、IL‑10、CCL4与BLyS。上述结果共同表明,Resiquimod在体内与细胞层面激活TLR7/8–Myd88–NF‑kB信号,增强淋巴细胞增殖与存活,提高免疫基因表达,并降低感染鱼体内的细菌负荷。[3]
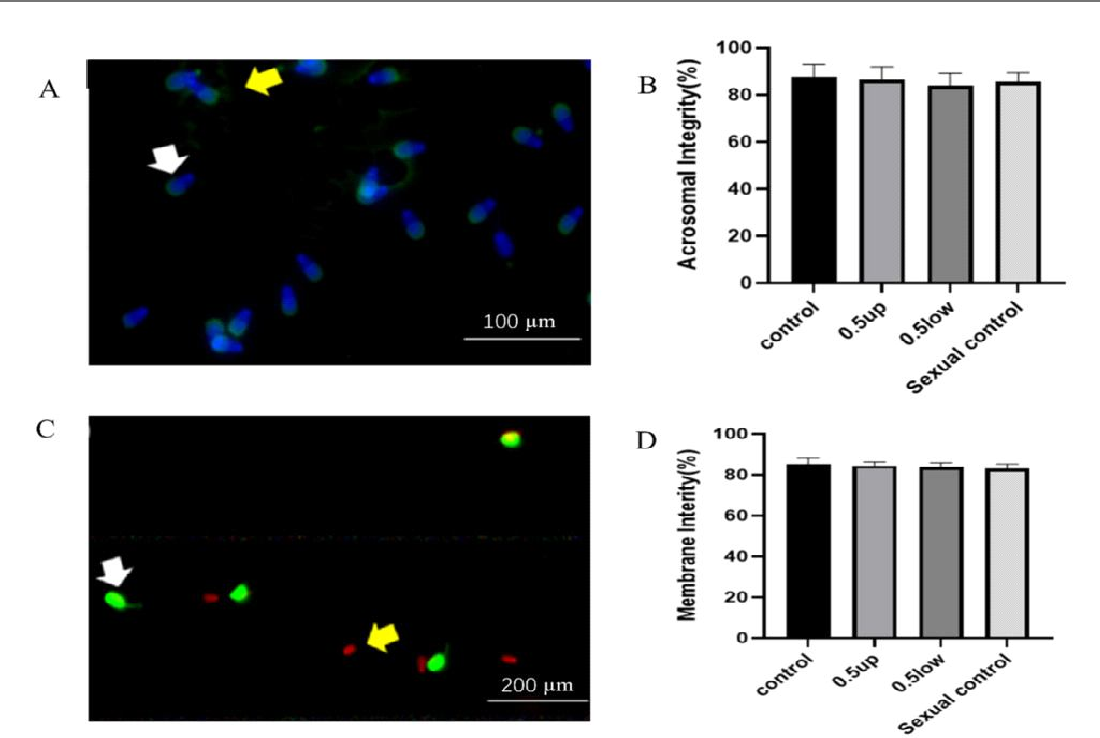
▲ 0.5 μmol/L Resiquimod (R848) 对精子顶体完整性(A, B)和质膜完整性(C, D)的影响。 (A) 精子顶体状态的荧光显微图像(蓝色为 DAPI 染核,绿色标记顶体;白色箭头指示顶体完整的精子,黄色箭头指示顶体受损/缺失的精子,比例尺 = 100 μm);(B) 各组精子顶体完整性的定量统计(control、0.5up、0.5low 和 Sexual control);(C) 精子质膜状态的荧光显微图像(绿色/红色标记;白色和黄色箭头分别指示不同质膜状态的精子,比例尺 = 200 μm);(D) 各组精子质膜完整性的定量统计。结果表明,与对照组相比,0.5 μmol/L Resiquimod (R848) 处理组(0.5up 和 0.5low)的精子顶体完整率和质膜完整率均无显著变化,提示该浓度的 R848 对精子结构完整性无明显不良影响。
Resiquimod (T6964) 在本研究中被描述为一种TLR7/8激活剂。将 Resiquimod 引入上游分离方法后,研究显示该方法的分离效率得到进一步提升。与经解冻公牛精子共同孵育时,上层精子的比例显著下降。研究还指出,上层精子比例的降低与 Resiquimod 的浓度和孵育时间呈正相关,这表明 Resiquimod 对部分精子运动能力具有选择性抑制作用,导致能够上游迁移的运动性精子比例减少。与此同时,研究明确指出,Resiquimod 对X精子运动性和速度的抑制作用具有可逆性,并且这种抑制可通过洗脱被有效消除。综合来看,Resiquimod 在本研究中以浓度和时间依赖的方式调控精子运动性,从而提高基于上游法的分离效率,同时其对X精子运动性与速度的抑制在洗脱后可被逆转。[4]
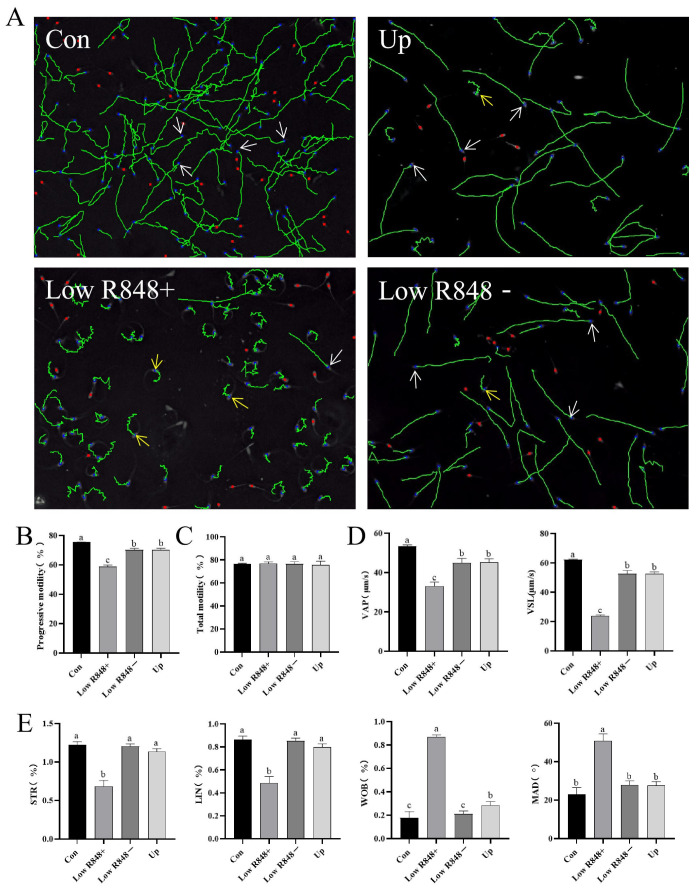
▲ Resiquimod (R848) 对奶山羊精子运动动力学参数的影响。 (A) CASA 系统捕获的精子运动轨迹图(白色箭头指示直线运动轨迹,黄色箭头指示非线性运动轨迹);(B–C) R848 对奶山羊精子前向运动率 (B) 和总活力 (C) 的影响;(D) R848 对奶山羊精子平均路径速度 (VAP) 和直线路径速度 (VSL) 的影响;(E) R848 对奶山羊精子其他运动参数的影响。不同小写字母表示组间差异显著(p < 0.05),相同字母表示无显著差异(p ≥ 0.05)。结果表明,Low R848+ 组显著降低了奶山羊精子的前向运动率和多项运动速度参数,而 Low R848− 组和 Up 组的各项运动参数与对照组 (Con) 相比基本保持正常。
Resiquimod (T6964) 在本研究的公羊精液悬浮体系中被检验其作用。结果显示,Resiquimod 处理改变了下层精子的运动模式,提示其直接影响精子运动特征。进一步地,与 Resiquimod 共同孵育显著降低了下层精子的 ATP 含量与线粒体膜电位,表明在实验条件下其削弱了细胞能量状态与线粒体功能。随后经洗脱处理,先前暴露于 Resiquimod 的下层精子的前向运动能力、ATP 水平以及线粒体膜电位均显著恢复,显示运动性与生物能指标具可恢复性。综合上述结果,本研究证实 Resiquimod 在下层精子中引发的运动性抑制是可逆的。整体来看,Resiquimod 先改变量化为下层群体的运动模式,并降低其能量与线粒体相关指标,随后在洗脱后这些关键参数得到显著恢复,界定了 Resiquimod 在该体系中对精子生物能与运动性的具体作用及其可逆性特征。[5]
Resiquimod 作为内体定位的TLR7/8小分子激动剂,通过模拟单链RNA配体促进受体二聚化及MyD88募集,组装信号复合体并激活NF-κB与IRF7通路,诱导TNF-α、IL-6及IFN-α等促炎和抗病毒因子的表达,实现炎症轴与抗病毒轴的耦联。文献显示,Resiquimod可通过TLR7/8–MyD88–NF-κB信号通路促进淋巴细胞增殖与存活,降低体内细菌感染负荷,同时在精子运动性及能量代谢调控中表现出可逆性作用,提升精子分离效率。未来研究方向包括进一步开发其在抗病毒、抗肿瘤免疫治疗中的应用,优化生殖技术,以及构建炎症和自身免疫疾病模型,充分利用其精准的免疫调节及生物能量调控特性。
Q1: Resiquimod 激活免疫反应的主要机制是什么?
A1: Resiquimod 通过结合内体定位的TLR7和TLR8,促进受体二聚化及适配蛋白MyD88的募集,组装信号复合体,激活NF-κB和IRF7通路,进而上调促炎细胞因子TNF-α、IL-6及I型干扰素IFN-α的表达,实现免疫激活。
Q2: 研究中Resiquimod如何影响精子的运动性及分离效率?
A2: Resiquimod 以浓度和时间依赖的方式选择性抑制X染色体精子的运动性和速度,从而提高上游法的精子分离效率。该抑制作用是可逆的,经过洗脱后精子的运动能力和能量指标均能恢复。
Q3: 有哪些证据支持Resiquimod在鱼类抗菌免疫中的作用?
A3: 在金鲳中,Resiquimod剂量依赖性促进头肾淋巴细胞增殖与存活,抑制体内细菌复制,显著降低肝、脾、肾中Edwardsiella tarda感染水平。阻断内体酸化或抑制MyD88功能均减弱其效应,敲低TLR7、TLR8或MyD88则增加细菌扩散,表明其抗菌作用依赖于TLR7/8–MyD88–NF-κB通路。
[1] Heil F, Hemmi H, et al. Species-specific recognition of single-stranded RNA via Toll-like receptor 7 and 8. Science. 2004;303(5663):1526-1529.
[2] Gorden KB, Gorski KS, et al. Synthetic TLR agonists reveal functional differences between human TLR7 and TLR8. Journal of Immunology. 2005;174(3):1259-1268.
[3] Zhou Y, Chen X, Cao Z, Li J, Long H, Wu Y, et al.. R848 Is Involved in the Antibacterial Immune Response of Golden Pompano (Trachinotus ovatus) Through TLR7/8-MyD88-NF-κB-Signaling Pathway. Frontiers in Immunology. 2021;11():.
[4] Li J, Song Y, Dong Y, Guo Q, Wang H, Li Y. Effects of TLR7/8 Activator on Sperm Quality, Energy Metabolism and the Separation Efficiency of X- and Y-Chromosome-bearing Sperm in Frozen-thawed Bull Semen. Indian Journal of Animal Research. 2025;(Of):.
[5] Guo S, Zhang X, Zhang X, Hu Z, Li Y, Wen F, et al.. Ginsenoside Rc Improves Chilled Storage Quality of Lower-Layer X-Bearing Dairy Goat Spermatozoa Through Enhanced Mitochondrial Function and Antioxidant Capacity.. Biology. 2026;15(15):.
科学新闻、观点和分析的重要汇总,每个工作日都会发送到您的收件箱.
 嗨!有任何问题?点我咨询
版权所有©2015-2026 TargetMol Chemicals Inc.保留所有权利.
沪ICP备20019793号-4 | 沪公网安备 31010602006700号 | 沪(静)应急管危经许[2024]203441